2012
受精リカバリーシステムの発表
- 読売新聞 2012年5月20日付 朝刊
- 中日新聞 2012年5月18日付 朝刊
- CBCテレビ 2012年5月18日
- 新聞社6社ほか、Webでも広く報道
 笠原研究室
KASAHARA LABORATORY
植物の生命現象を見つめ、まだ知られていない仕組みを解き明かす。
研究と発見から、新たな科学の扉をひらきます。
笠原はこれまで一貫して20年以上、被子植物(高等植物)の生殖に興味を持って研究を進めてきました。生殖は、遺伝や初期発生とも深く関係する、極めて重要な現象です。その基本原理の解明は、植物の様々な仕組みの理解につながるだけでなく、育種や農業にも直結すると期待されます。
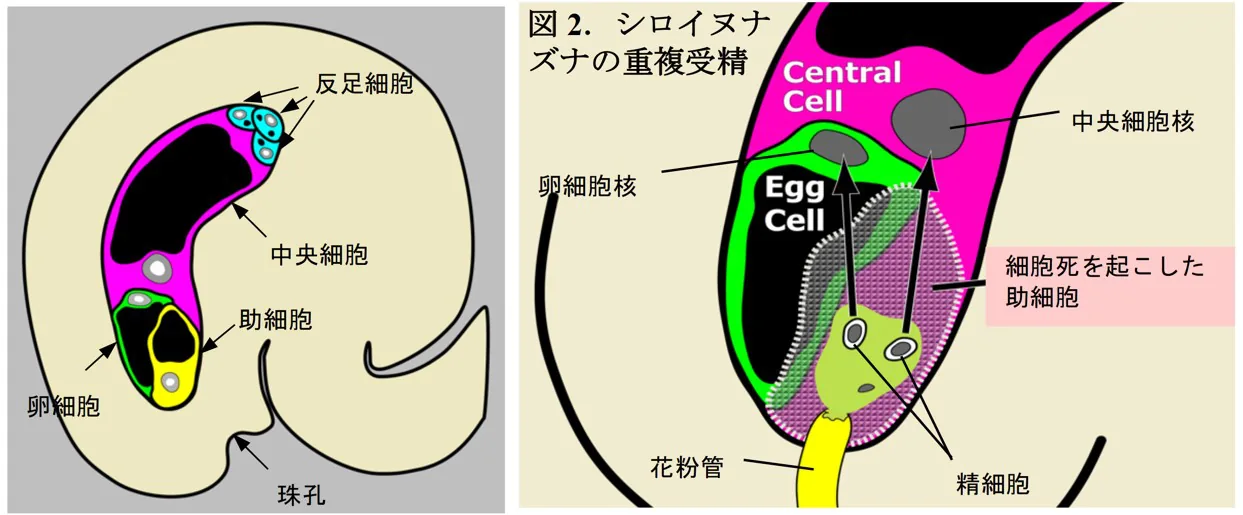
図1. シロイヌナズナの雌性配偶体
雌性配偶体は7つの細胞から出来ており、卵細胞一つ、助細胞二つ、中央細胞一つ、反足細胞三つで構成されています。
このように形態学的に植物の受精というものは理解されているとはいえ、まだこれまでに発見されていなかった分子生物学的あるいは組織学的な知見はまだまだ存在します。その謎に私たちの研究室は挑戦しています。
Members
研究室のメンバー
山形大学農学部 鶴岡ガストロノミックイノベーション研究所で、笠原研究室の研究と運営を担うメンバーです。
長年、雌性配偶体の研究をしてきました。これまで雌性配偶体に必要な遺伝子や機能、組織を発見してきましたが、まだまだ研究し足りないです。これからも皆さんと力を合わせて色々見つけいていきたいです。
植物の栽培技術の開発や新たな活用法の開拓を通して、在来野菜をはじめとする植物資源の新たな価値を見出す研究を目指しています。
ラボの円滑な運営のため、縁の下の力持ちとして頑張っていきます。
I investigate nutrients transport mecahnism during ovule and seed development in flowering plants. My current project focuses on identifying the fertilization dependent nutrients gates and analyzing the callose deposition pattern using microscopy and molecular techniques to understand how nutrients flow is regulated between maternal tissues and the developing embryo.
Topics
研究室のテーマ
笠原は米国のユタ大学でMYB98 を同定した(Kasahara et al., 2005, Plant Cell. 被引用回数 366回)。MYB98 は雌性配偶体の「助細胞」のみ (図1) で発現し、かつ遺伝子破壊株は花粉管を誘引することができない。被引用回数が 350 回を数えることから、MYB98 は世界中で今なお変異体、発現マーカー共に花粉管誘引の研究において欠かすことのできない重要な遺伝子である。MYB98 は助細胞が分泌する花粉管誘引物質の発現を制御することから、笠原による MYB98 の同定が、のちの LURE ペプチドの発見にも貢献した(Okuda et al., 2009, Nature.)。
また笠原は 2016 年にシロイヌナズナを用いて、POEM(pollen tube-dependent ovule enlargement morphology)現象を報告した(Kasahara et al., 2016, Science Advances)。 POEM は、花粉管内容物が胚珠内の雌性配偶体に放出されると仮に受精することができなくても、胚珠が肥大を始める現象である。(ここまでの内容はhttps://spc.jst.go.jp/experiences/studylife/studylife_2004.html にも掲載があります。)
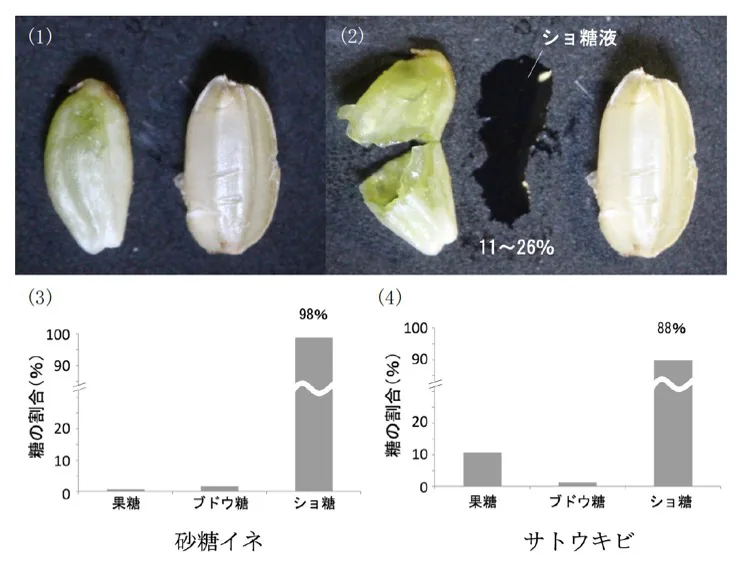
この現象はイネでも存在することが判明した(図2-1)。さらに興味深いことに、肥大した胚珠の中は、デンプンではなく液体で満たされており(図2-2)、ショ糖が 98%、果糖とブドウ糖が僅か 1%ずつ含まれており、精製しなくても既に非常に高純度なショ糖液であることがわかった(図2-3)。今回作成できた「砂糖イネ」は、世界にサトウキビ、テンサイ以外の「第3の製糖植物」を提供できる可能性を示唆している。(主要 論文 6:Honma et al., 2020, Communications Biology; 研 究 業 績 ) ( 当 研 究 内 容 は https:// www.rikelab.jp/study/9179 にも掲載があります。)
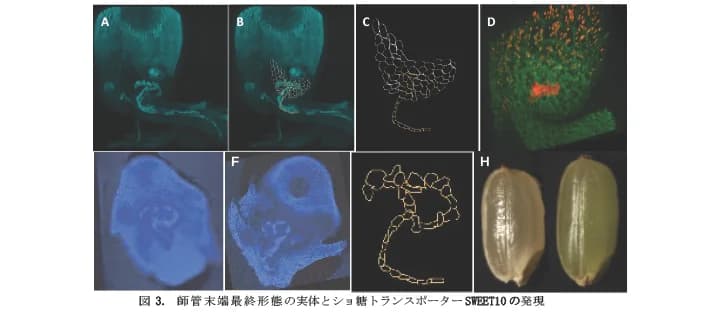
笠原はPOEM 現象に加えて、胚珠(受粉後 2 ⽇)の珠柄に近い部分に新規構造物を発⾒した(図3)。この構造物は受精によってそのシグナルが弱まるが、受精失敗後にそのシグナルが強くなっていることが強く⽰唆された。(Liu et al., Current Biology 2025)
この構造物はアニリンブルーで染⾊されるため、研究チームは構造物の主成分はβグルカンの⼀種であるカロースであると判断した。そこで、研究チームは beta-1,3-glucanase遺伝⼦群の発現プロファイルを確認し、2 つのカロース分解酵素遺伝⼦(Callose Degradation Enzyme 1, 2: CDE1, CDE2)を同定し、cde1変異体の表現型を観察した。その結果、野⽣型の構造物に対して、cde1/cde1 変異体の構造物は完全に分解されず、野⽣型と gcs1/ gcs1 変異体の中間的なシグナル強度を⽰すことが分かった。cde1/cde1 変異体の形成する種⼦は野⽣型に対して有意に⼩さいことがわかった。これらの結果より、CDE1 は種⼦形成の際に受精依存的に発現し、このカロース門を分解する機能を有し、母組織から栄養を輸送するために非常に重要な働きを持っている事が示唆された。しかし、cde1/cde1 変異体ではこの構造物を完全に分解することが出来ないために、充分な栄養が種⼦内に流⼊せず、栄養不⾜により種⼦形成不全の表現型を⽰す事が⽰唆された。さらに、CDE1 遺伝⼦過剰発現体の種⼦は野⽣型に⽐べ 16%ほど肥⼤しており、これはこのカロース⾨を完全に開放することにより、⺟体からの栄養が野⽣型に⽐べより多く供給されているためであることを⽰唆している。(Liu et al., Current Biology 2025)
続いて、研究チームはこのカロース門と定義してきた構造物の実体を詳細に観察した。その結果この構造物は師管に直接接続されている細胞群で構成される組織であることを突き止めた(図 3A-C)。さらに、ショ糖トランスポーターである sweet10 タンパクの局在を調べた結果、この構造物に特異的に発現が認められた(図 3D)。これらのことから、この構造物はカロースを蓄積して栄養の供給の調節に機能しているだけではなく、この構造物自体が種子に栄養を分泌する組織であることも判明した。イネに関してもこの実体を明らかにするために胚珠を観察したところ、シロイヌナズナと酷似した組織が発見された(図 3E-G)。さらにシロイヌナズナ同様、CDE1 遺伝⼦過剰発現体の種⼦をイネで調べたところ、普通の日本晴(図 3H左)に対して過剰発現株(図 3H右)は9%大きな種子を形成していた。植物の新規組織の発見はここ 160 年報告がなく、また、これまで師管が最終段階でどのようにして各器官に栄養を輸送するかは不明であったが、当研究により植物の栄養輸送に関する知見を大幅に広げることができた。これらのことから、当該研究は新規性に富んでおり、今後の種子研究また師管を通じての植物各器官への栄養輸送研究の発展に大きく資するものである。さらに、双子葉、単子葉双方の種子を肥大させる手法として今後種子肥大育種に大きく貢献できる技術であると言える
(Liu et al., Current Biology 2025)。
Selected Publications
論文・成果
被子植物の生殖を軸に、MYB98の同定からPOEM現象、砂糖イネ、笠原ゲートウェイまで、査読付き原著を中心に発表しています。
Kasahara RD, Portereiko MF, Sandaklie-Nikolova L, Rabiger DS, Drews GN (2005) MYB98 is required for pollen tube guidance and synergid cell differentiation in Arabidopsis The Plant Cell DOI: 10.1105/tpc.105.034603
Kasahara RD, Maruyama D, Hamamura Y, Sakakibara T, Twell D, Higashiyama T (2012) Fertilization Recovery after Defective Sperm Cell Release in Arabidopsis Current Biology DOI: 10.1016/j.cub.2012.03.069
Kasahara RD, Notaguchi M, Nagahara S, Suzuki T, Susaki D, Honma Y, Maruyama D, Higashiyama T (2016) Pollen tube contents initiate ovule enlargement and enhance seed coat development without fertilization Science Advances DOI: 10.1126/sciadv.1600554
Honma Y, Adhikari PB, Kuwata K, Kagenishi T, Yokawa K, Notaguchi M, Kurotani K, Toda E, Bessho-Uehara K, Liu X, Zhu S, Wu X, Kasahara RD (2020) High-quality sugar production by osgcs1 rice Communications Biology DOI: 10.1038/s42003-020-01329-x
Adhikari PB, Zhu S, Liu X, Huang C, Xie L, Wu X, He J, Mitsuda N, Peters B, Brownfield L, Nagawa S, Kasahara RD (2023) Discovery of a cis-regulatory element SaeM involved in dynamic regulation of synergid-specific MYB98 Frontiers in Plant Science DOI: 10.3389/fpls.2023.1177058
Liu X, Nakajima KP, Adhikari PB, Wu X, Zhu S, Okada K, Kagenishi T, Kurotani K, Ishida T, Nakamura M, Sato Y, Kawakatsu Y, Xie L, Huang C, He J, Yokawa K, Sawa S, Higashiyama T, Bradford KJ, Notaguchi M, Kasahara RD (2025) Fertilization-dependent phloem end gate regulates seed size Current Biology DOI: 10.1016/j.cub.2025.03.033
Press
報道実績
プレスリリース後、新聞・テレビ・海外メディアで研究成果が継続して取り上げられています。2025年の新組織発見は、大手紙・地方紙を含め40紙以上に掲載されました。
2012
2016
2020
2023
2025
Message
代表挨拶
植物という、日々目にしながらもまだ解き明かされていないことの多い対象と 向き合い続けています。POEM現象や笠原ゲートウェイの発見も、当たり前と 思われてきた現象を丁寧に観察し直すところから生まれました。
山形大学農学部という場所で研究を続けられることに感謝しつつ、 成果は学外の方にも分かりやすい形でお伝えしたいと考えています。 研究内容についてのご質問や、研究室での採用に関するお問い合わせは、 私自身が直接お返事いたします。お気軽にご連絡ください。
山形大学農学部鶴岡ガストロノミックイノベーション研究所 教授
Recruit
採用情報
笠原研究室では、以下の職種を随時募集しています。ご興味のある方は、 代表・笠原竜四郎宛のメールにてお問い合わせください。
募集中
研究室運営に関わる事務全般のお仕事です。
募集中
実験・栽培管理など研究活動を技術面から支えていただきます。
募集中
POEM現象・笠原ゲートウェイに関する研究を、研究員として共に推進していただきます。
Profile
研究所概要
| 名称 | 山形大学農学部鶴岡ガストロノミックイノベーション研究所(笠原研究室) |
|---|---|
| 代表者 | 笠原竜四郎 |
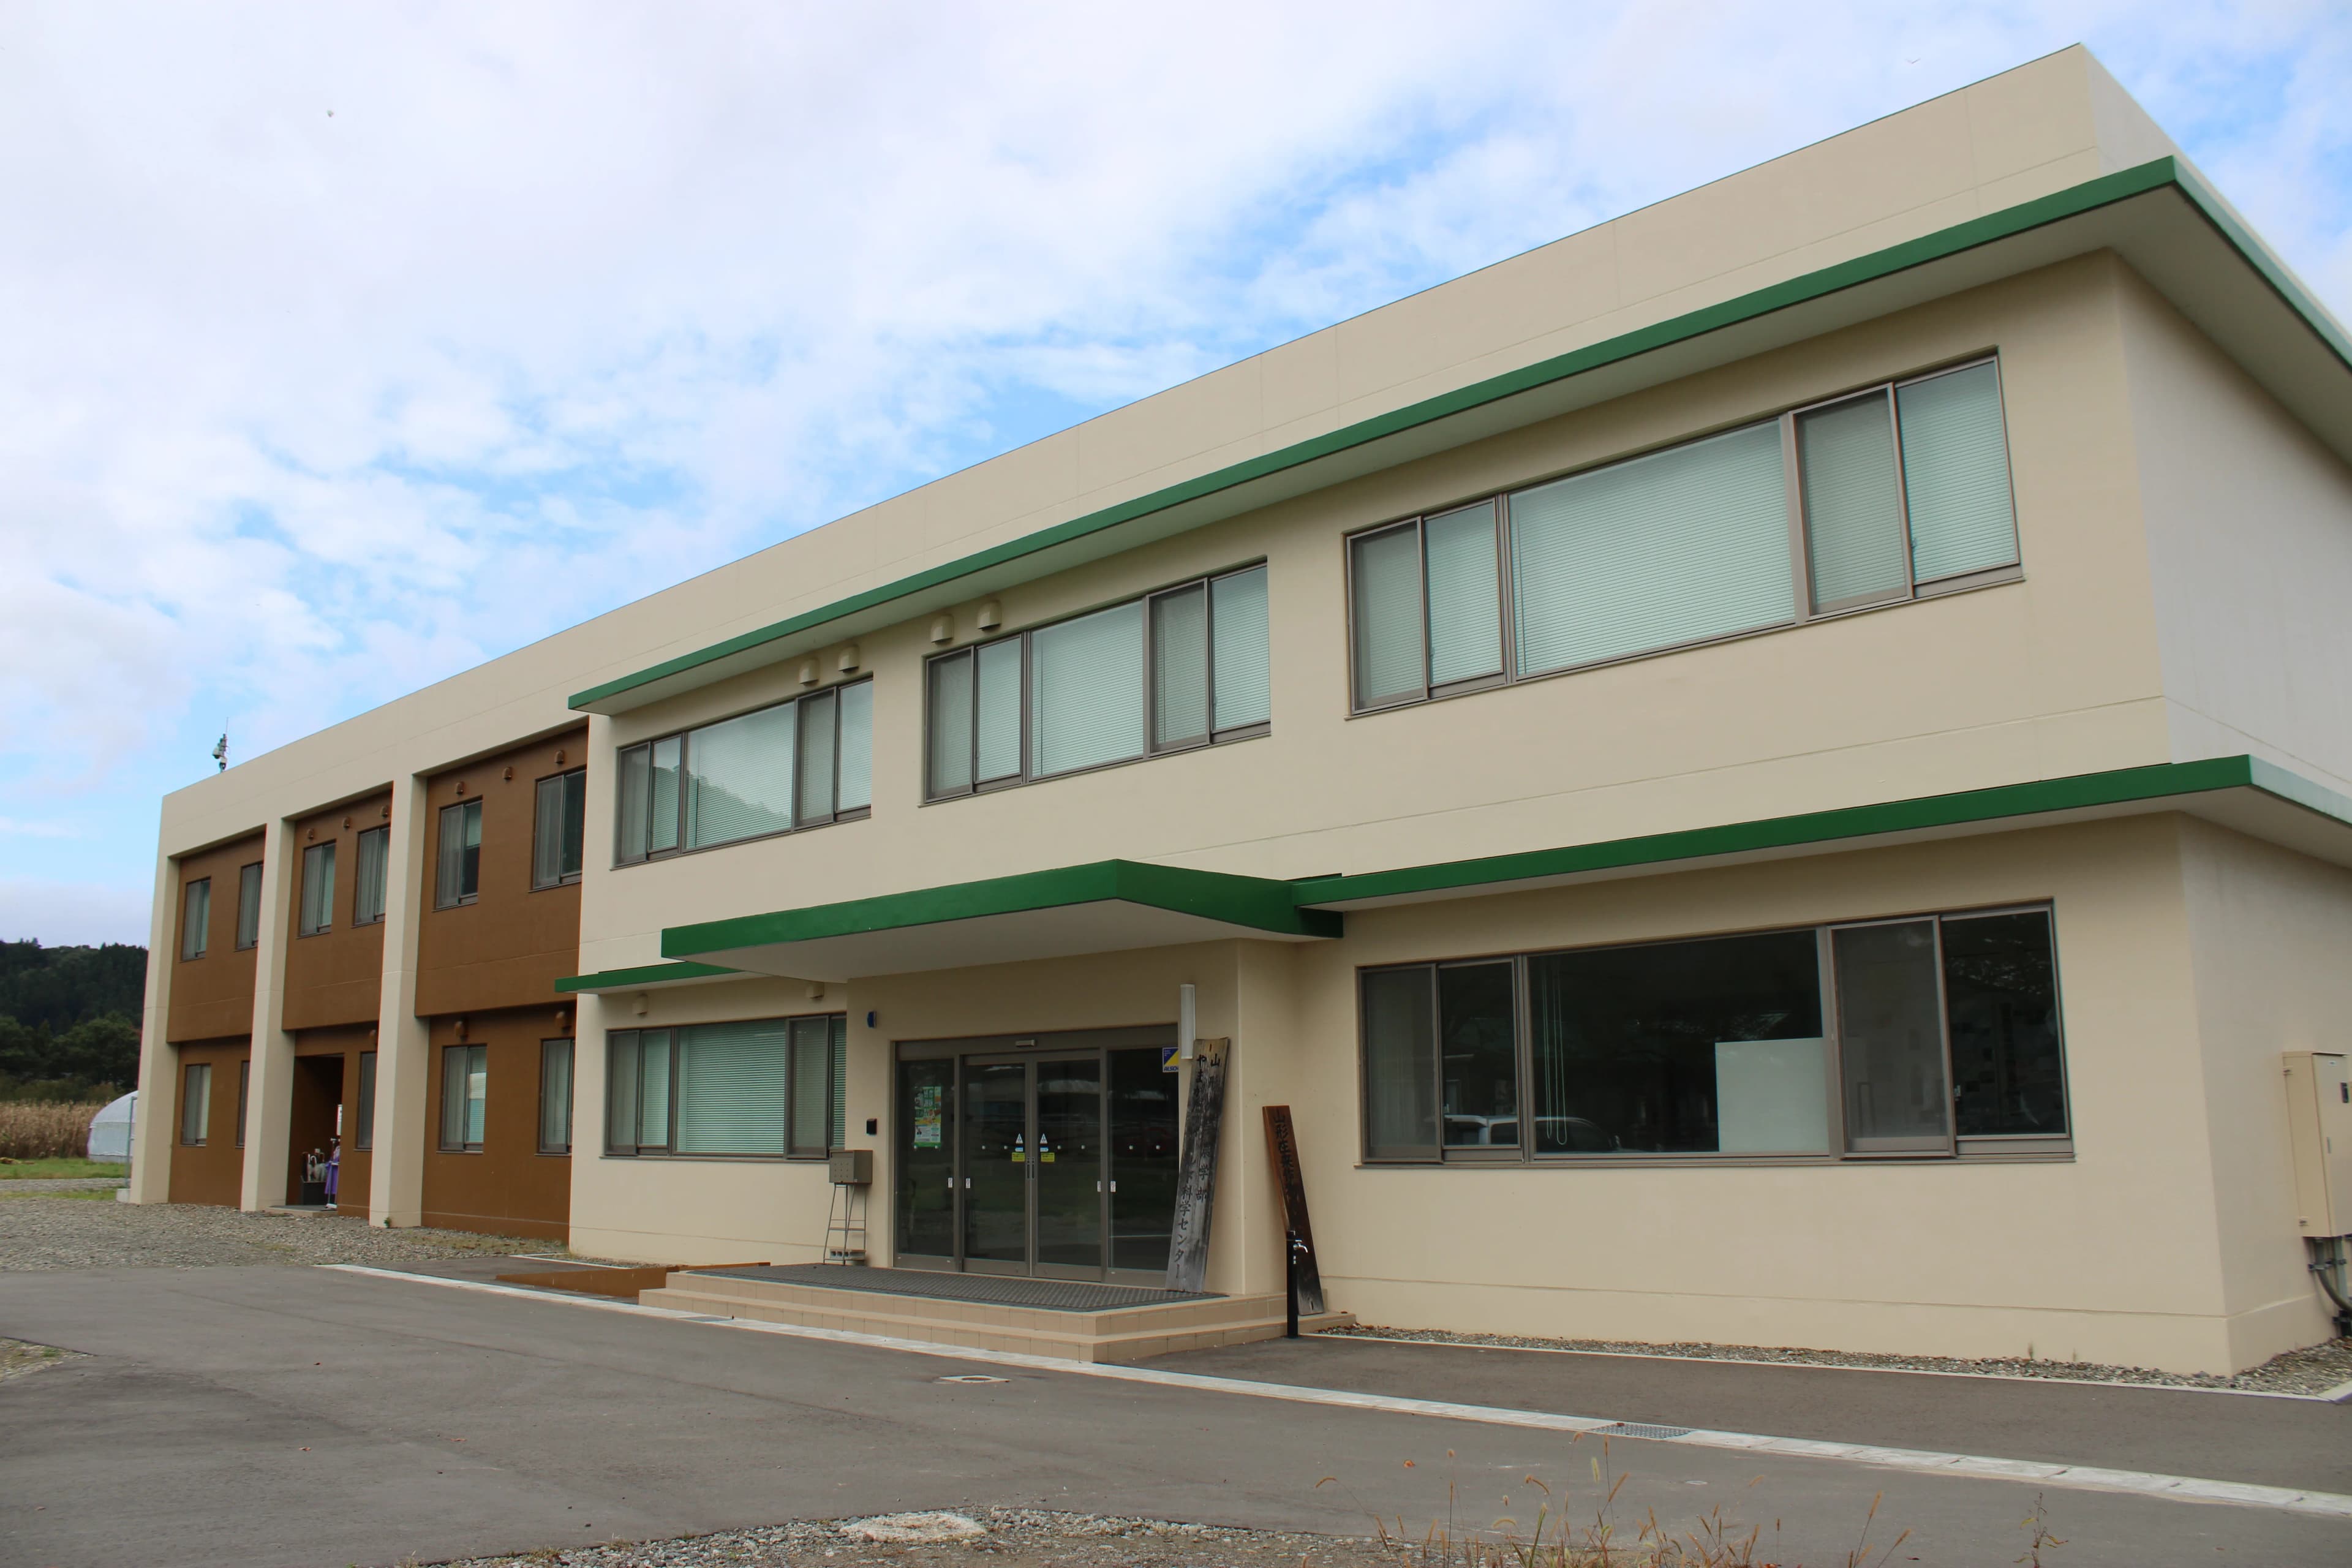
| 所在地 | 山形県鶴岡市高坂古町5−3 |
| 研究拠点 | 山形大学農学部(現地にて研究活動を実施) |
| 電話 | 0235-26-9787 |
| メール | rkasahara@tds1.tr.yamagata-u.ac.jp |
Access
アクセス
Links
関連リンク
資料に記載のあった外部ページです。三角印がついた項目からご覧いただけます。
笠原の研究の歩みが掲載された科学技術振興機構の記事
砂糖イネ研究の解説記事
2016年POEM現象のプレスリリース
160年ぶりの植物新組織発見を伝える海外記事